
Marco Spalluto
Il lavoro che presentiamo s’inserisce in una progettualità di più ampio respiro denominata BIOFACE (“Biomolecole dalla valorizzazione integrata di sottoprodotti agroalimentari per applicazioni sostenibili con finalità fitosanitarie, alimentari, ed energetiche” – Programma di Sviluppo Rurale PSR 2014-2020 Op. 16.1.01 – GO PEI-Agri – FA 5C) finanziata dalla Regione Emilia Romagna e che prevede, tra le sue azioni, la valorizzazione di prodotti di scarto della filiera agro-alimentare, attraverso metodiche proprie della green chemistry. Questi sottoprodotti diventano oggetto di ricerca per valorizzare le sostanze in essi contenuti, come polifenoli e altri metaboliti d’interesse e proporne un utilizzo in un contesto sia fitosanitario sia salutistico.
Nel rapporto della FAO (Food and Agriculture Organization of United Nations) del 2001 relativo alle perdite e agli sprechi alimentari a livello mondiale è stato stimato che ogni anno, circa un terzo di tutti i prodotti commestibili destinati al consumo umano vada perso o sprecato durante tutto il processo di produzione degli alimenti, dalla produzione agricola alla lavorazione, alla vendita, alla conservazione e consumo [FAO 2011, p. 4]. Dato che il risultato della stima è stato ampiamente citato in letteratura, la stessa FAO ha deciso di valutare successivamente e in maniera più accurata e precisa la quantità di cibo persa nella catena di produzione e di approvvigionamento prima di raggiungere la fase di vendita attraverso l’indice FLI (Food Loss Index), producendo in merito nel 2019 un dettagliato rapporto e prevedendo a breve di rendere noti i restanti dati relativi allo spreco alimentare dei consumatori e del settore dedicato alla vendita attraverso l’indice FWI (Food Waste Index). La stima accurata di FLI consente di affermare che il 14% del cibo mondiale viene perso nelle fasi che vanno dalla produzione fino al livello di vendita. Questi dati più precisi consentiranno di mantenere monitorati i risultati degli sforzi che si vorranno attuare, e che sono già stati intrapresi, per ridurre le perdite e lo spreco di cibo, obiettivo specifico del più generale, identificato con il numero dodici, “produzione e consumo responsabile” dell’Agenda 2030. I miglioramenti avranno anche importanti impatti sulla sicurezza alimentare, sulla nutrizione e sulla sostenibilità ambientale.
Il consumo di cibo e lo sperpero alimentare della società moderna rappresentano un enorme spreco di risorse usate per la produzione quali l’energia, l’acqua e la terra. Una produzione di cibo che non raggiungerà mai la tavola porta a sprechi inutili di fonti fossili largamente impiegate per coltivare, spostare, processare gli alimenti, in aggiunta al metano prodotto dalla digestione anaerobica, che si ha se i rifiuti alimentari vengono destinati alla discarica. Queste concorrono in maniera fondamentale e univoca al cambiamento climatico ma, oltre le emissioni, lo spreco di cibo è connesso a un inutile utilizzo di terreni per la coltivazione che porta a una rilevante perdita in termini di biodiversità (FAO, 2019).
Partendo da questo presupposto, si comprende come riuscire a valorizzare o semplicemente recuperare uno scarto significhi un risparmio energetico nella produzione e una riduzione dell’inquinamento ambientale prodotto dal rifiuto stesso, con la conseguenza di tutti gli effetti che si trasporrebbero sul sistema climatico. Quindi, riuscire anche solo a entrare nella filosofia del recupero per quei rifiuti che terminerebbero il proprio ciclo di vita e sarebbero destinati allo smaltimento, ridurrebbe i problemi ambientali ed economici della società attuale.
Il recupero del materiale di scarto dovrebbe avvenire in maniera critica soprattutto se la fonte è vegetale, poiché la matrice può racchiudere molte sostanze biologicamente attive, come le fibre alimentari, che sono già importanti costituenti per la nostra nutrizione; e può essere anche fonte di energia rinnovabile e biodegradabile, come i biopolimeri, oggi sempre più presenti nella battaglia contro la plastica e riutilizzati nella filiera alimentare, più precisamente nella produzione di coltivazioni da reddito (Ramírez, et al., 2010). Inoltre, questi ultimi possono essere sfruttati per la loro azione antibatterica, antimicrobica e per la difesa delle piante, un altro grande problema nelle filiere agroalimentari (Valdés, Arantzazu, et al., 2014).
Partendo dal presupposto che l’estrazione di componenti fitochimici possa rispettare i principi della green chemistry, definita come “l’utilizzo di una serie di principi che riducono o eliminano l’uso o la generazione di sostanze pericolose nel design, nella manifattura e nell’applicazione di prodotti chimici” (Anastas, and Warner, 1998), si sottolinea in primis il bisogno di ridurre le quantità di rifiuti a partire dal laboratorio, con la successiva applicazione anche a livello industriale. Il campo della green chemistry ha dimostrato come i chimici possano progettare prodotti e processi di nuova generazione in modo che siano redditizi, pur rispettando la salute umana e l’ambiente.
Questo progetto si è voluto concentrare sull’importanza della salvaguardia ambientale con lo scopo principale di ridurre lo scarto di filiera, ma anche di modificare l’approccio al suo trattamento, utilizzando solventi green quali etanolo e acqua. In aggiunta, ogni matrice vegetale esausta dopo estrazione non è stata gettata, bensì è stata conservata per la realizzazione di una seconda fase del progetto legata alla metanogenesi.
Solventi
I solventi rappresentano forse l’area più attiva della ricerca sulla green chemistry, perché spesso costituiscono la stragrande maggioranza della massa sprecata in sintesi e processi. Molti solventi convenzionali sono tossici, infiammabili e/o corrosivi. Le loro caratteristiche di volatilità e solubilità hanno contribuito all’inquinamento dell’aria, dell’acqua e del suolo, hanno aumentato il rischio di esposizione dannosa dei lavoratori ed in taluni casi determinato l’insorgere di gravi incidenti (Giuliana Vinci, et al., 2007). I processi di recupero e di riutilizzo, quando possibili, sono spesso associati a processi di distillazione, non sempre esse stesse esenti da problematiche inquinanti. Nel tentativo di affrontare tutte queste carenze, i chimici hanno avviato la ricerca di soluzioni più sicure e di nuove proposte più “verdi”. Sistemi senza solvente, che sfruttano l’utilizzo di acqua, CO2 supercritica (SCF) e, più recentemente, liquidi ionici (DES e NaDES).
Da questo punto di vista, la CO2 come solvente allo stato supercritico è particolarmente interessante. Seguendo la curva di vaporizzazione nel diagramma di stato, al di sopra dei valori critici di temperatura e pressione, la CO2 si ritrova a uno stato intermedio tra quello liquido e quello aeriforme acquisendo proprietà solvatanti utili e particolarmente efficienti in prevalenza per categorie chimiche poco polari. Al termine del processo estrattivo, la CO2, tornando a condizioni di pressione e temperatura ambientali ritorna allo stato di gas, che potrà essere recuperato e riutilizzato o ritornare nell’atmosfera di cui già naturalmente è parte. La CO2 supercritica come solvente di estrazione ha trovato una vasta gamma di applicazioni industriali, che coinvolgono l’ottenimento di molecole non necessariamente polari come la caffeina nel processo di decaffeinizzazione del caffè in sostituzione di solventi organici non green. Per questi motivi, il processo di estrazione con CO2 supercritica ha trovato e trova felice riscontro nei processi che minimizzano l’uso di solventi organici tradizionali.
Phaseolus vulgaris: botanica, fitochimica e proprietà salutistiche
Il fagiolo comune (Phaseolus vulgaris L., 1758) è una specie erbacea della famiglia delle Fabaceae, una famiglia di piante dicotiledoni dell’ordine delle Fabales. È originario dell’America meridionale, tra Perù e Colombia ed è naturalizzato in Asia. Nel bacino del Mediterraneo il maggiore produttore di fagioli è la Spagna, seguita da Portogallo, Italia e Grecia.
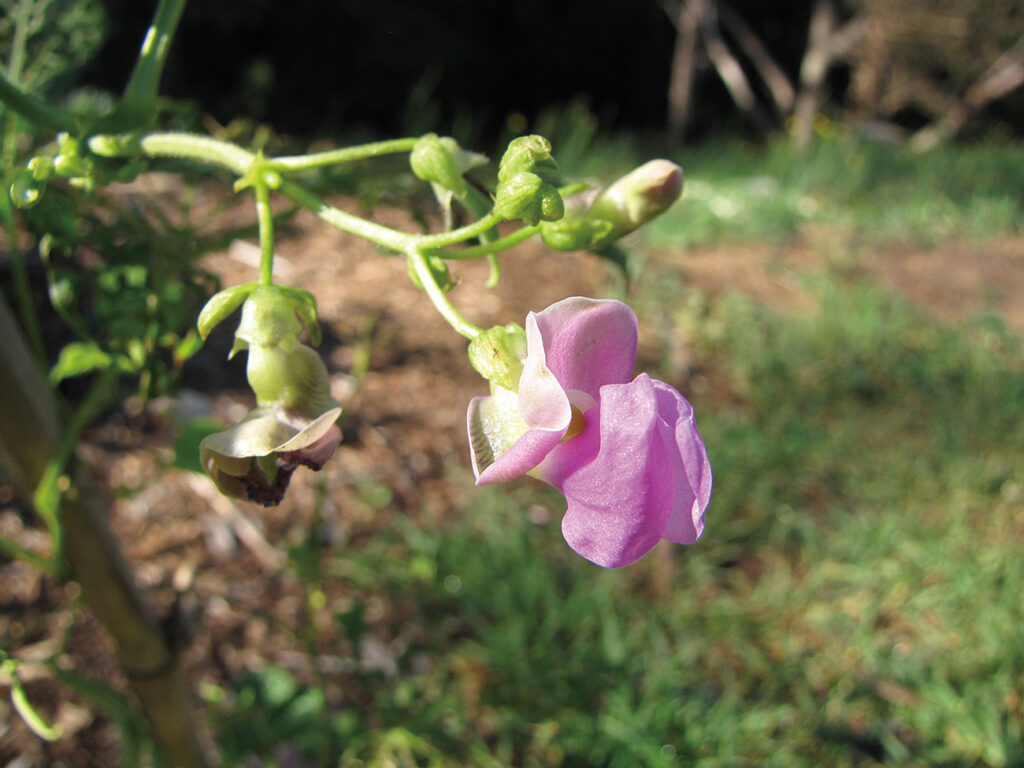
P. vulgaris è una pianta erbacea annuale a rapido sviluppo; l’apparato radicale è caratterizzato da una parte centrale maggiormente sviluppata (fittone) dalla quale fuoriescono numerose radici secondarie, spesso ramificate ed estese, ma solo negli strati superficiali del terreno, mentre gli steli sono angolosi, di altezza e portamento molto variabile, da nani a rampicanti. La specie è caratterizzata sia da varietà a crescita determinata (nane) che a crescita indeterminata (rampicanti). I fagioli nani sono i più adatti alla coltura di pieno campo, mentre i rampicanti sono preferiti in orticoltura dove la raccolta è scalare e manuale. Le prime foglie sono semplici, le successive sono invece trifogliate con foglioline a forma di cuore. I fiori riuniti a grappoli, in numero variabile da due a sei nelle varietà nane e fino a quindici nei rampicanti, sono inseriti all’ascella delle foglie, con corolla papilionacea di colore biancastro. La fecondazione è prevalentemente autogama perché la fioritura è cleistogama per cui le varietà s’identificano come linee pure. I frutti sono dei legumi penduli lunghi da 60 a 220 mm, diritti o incurvati, con parecchi semi di forma, colore e dimensioni molto variabili in funzione delle varietà (Baldanzi, Pardini; 2002).
Nel mondo risultano coltivati per la produzione di fagioli secchi oltre 25 milioni di ettari, per un totale di 18 milioni di tonnellate di un prodotto che, se danneggiato o deteriorato, sarebbe scartato ed eliminato dalla filiera alimentare.
In riconoscimento della grande importanza dei legumi per l’agricoltura sostenibile e l’alimentazione umana, l’Organizzazione delle Nazioni Unite per l’alimentazione e l’agricoltura (FAO) ha proclamato ufficialmente il 2016 “Anno internazionale dei legumi”, con l’obiettivo di attirare l’attenzione su queste importanti colture.
I fagioli comuni sono una fonte di proteine, fibre alimentari, ferro, carboidrati complessi, minerali e vitamine. Sono relativamente ricchi di antiossidanti e sono stati classificati tra i primi 10 ortaggi comuni in relazione al loro contenuto e all’attività antiossidante (Nunes, 2008). I fagioli sono inotre considerati tra gli alimenti a più alto contenuto di flavonoidi (Price, et al., 1998) e, in funzione anche di questo, stati ampiamente discussi in letteratura come alimenti funzionali con proprietà salutistiche. Per esempio, Pari (2003) descrive gli effetti anti-glicemici, antiossidanti e ipolipidemici dei baccelli del fagiolo verde nei ratti diabetici. In generale, gli antiossidanti dei fagioli comuni possono presentare potenziali benefici per la salute anche se in relazione ad attività dimostrate solamente in vitro, come:
– Azione antitumorale su cellule cancerogene del colon, determinata attraverso la morte cellulare per apoptosi correlata alla proteina chinasi dipendente da adenosina monofosfato (Lee, et al., 2009), e su cellule cancerogene umane gastriche (AGS) e colorettali (SW480) valutata come attività antiproliferativa (Xu e Chang., 2011)
– Attività anti-mutagenica contrastante l’azione dell’aflatossina B1 (Cardador-Martínez, et al., 2002)
– Attività antiossidante (Beninger, et al., 2003).
Per approfondire i risultati legati ai benefici per la salute, è fondamentale ottenere informazioni accurate sul profilo fitochimico delle sostanze antiossidanti nei fagioli comuni e sulla capacità estrattiva di vari metodi con particolare riferimento alla componente fenolica e ai glucani (González-Centeno, et al., 2014). Tra le categorie chimiche più importanti legate all’attività biologica di questa matrice troviamo i beta-glucani che, estratti dal baccello di fagiolo verde, mostrano un’attività ipoglicemizzante supportata dalla sinergia con l’attività della componente flavonoidica (Roman‐Ramos et al., 2003). Gli isoflavoni sono stati proposti per avere attività estrogenica e svolgere un ruolo putativo nella prevenzione della sindrome climaterica. Tra le proprietà salutari vi è inoltre il possibile ruolo nella protezione delle malattie renali, la riduzione di problematiche dovute a perdita della memoria come fisiologico processo correlato all’invecchiamento, la prevenzione di alcuni tipi di cancro, la tonificazione del metabolismo osseo e la riduzione della trombogenesi (Boué et al., 2003; Marin, et al., 2005). In ragione della crescente consapevolezza delle diverse proprietà delle fibre alimentari, una conoscenza accurata della struttura e della composizione dei polisaccaridi della parete cellulare è importante per comprendere meglio come anche le fibre possano innescare risposte fisiologiche (McDougall, et al., 1996).
Per ottimizzare il processo di estrazione da queste matrici vegetali, è inoltre importante conoscerne la localizzazione anatomo-istologica. Nelle leguminose il sito fondamentale per il deposito e sintesi ad esempio del polisaccaride β-glucano è la parete cellulare (Bhatty, 1990). I polisaccaridi della parete cellulare del seme di P. vulgaris non sono ampiamente descritti in letteratura e sono stati riportati solo pochi studi strutturali. O’Neill e Selvendran (1980) hanno studiato la composizione polisaccaridica della parete cellulare dei fagioli, evidenziando altri tipi di polimeri solubili, inclusi gli xiloglucani, strutture polimeriche composte da una frazione di β-glucano alternato a monomeri di xilano con un basso grado di ramificazione.
Tra le piante discusse ampiamente in letteratura per l’estrazione del β-glucano troviamo l’avena e l’orzo. I β-glucani vengono definiti come strutture carboidratiche con legami misti 1-3 e 1-4 glicosidici. Il β-glucano si trova principalmente nei granuli d’aleurone, nella parete cellulare dei tessuti del seme incluso l’endosperma (Vasquez et al., 2020). Si ritiene che la presenza di β-glucano nei fagioli comuni abbia la stessa localizzazione istologica di quanto osservato nei cereali, come peraltro già evidenziato da Bolwell, et al. anche se non recentemente ( 1981) e confermato da evidenze analitiche a seguito di processi estrattivi con solventi alcalini da Gooneratne, et al. (1994).
Tuttavia, per una migliore comprensione della struttura del polimero del legume e delle proprietà nutrizionali, sono necessari ulteriori studi.
Gli studi sui β-glucani in generale sono iniziati negli anni ’60 e ’70 del secolo scorso. Nella storia della ricerca sui β-glucani si possono tracciare due linee gradualmente convergenti. La prima si è svolta principalmente in Europa e negli Stati Uniti e la seconda in Giappone. Nell’ambiente euro-americano la ricerca si basava sulla conoscenza degli effetti immunomodulatori dello Zymosan, una miscela di polisaccaridi isolata dalle pareti cellulari di Saccharomyces cerevisiae. Zymosan è stato preparato da una frazione insolubile del lievito, bollendo la matrice prima a pH alcalino, poi con tripsina e lavandolo in seguito con acqua e alcool. Studiato per la prima volta da Pillemer ed Ecker (1941) da allora questo processo estrattivo e di preparazione è stato utilizzato in numerosi studi. Zymosan è un potente stimolatore soprattutto dei macrofagi e induce anche il rilascio di una serie di citochine dai neutrofili. Per molti anni non è stato chiaro quale parte di questa composizione grezza fosse responsabile delle sue attività. Quando lo Zymosan è stato esaminato nel dettaglio, il β-glucano è stato identificato come il componente che ha mostrato l’effetto primario. Il glucano è stato successivamente isolato e i suoi effetti immunologici sono stati ulteriormente studiati.
Lo studio dei β-glucani è stato invece affrontato diversamente in Giappone. Nella medicina dell’Estremo Oriente, il consumo di funghi medicinali, noti per essere ricchi di tali componenti carboidratici, proviene da un’antica tradizione. Un interesse per queste azioni ha portato a studi dettagliati sugli effetti biologici di questi funghi. Come risultato di questi studi, i β-glucani sono stati nuovamente indicati come una delle principali cause di immunomodulazione non specifica (Chihara, et al., 1969).
La difficoltà nel caratterizzare chimicamente e biologicamente queste miscele di β-glucani è rappresentata anche dal fatto che nell’estratto oltre alla frazione polisaccaridica sono presenti anche proteine e aminoacidi che possono essere componenti neutre o interferire in modo agonista o antagonista con la bioattività (Borchers, et al., 1999; Brown e Gordon, 2003).
I β-glucani di diversa origine biologica, pur mantenendo le medesime macro-caratteristiche chimiche, si differenziano per il grado e tipo di ramificazione e per la tipologia dei legami β: i β-glucani derivati da funghi e lieviti presentano legami principalmente β-1,3 e β-1,6 mentre quelli derivati da cereali e legumi hanno prevalentemente legami β-1,3 e β-1,4 (Patchen e, MacVittie, 1985). I β-glucani variano quindi notevolmente nella loro struttura macromolecolare, che incide sulla loro solubilità, sul peso molecolare, sul grado di ramificazione e grado di polimerizzazione, nonché sulla biodisponibilità ed affinità rispetto a recettori determinando anche una certa variabilità nell’espressione dell’attività biologica (Zekovic, et al., 2005; Jin et al., 2018). Possiamo quindi aggiungere che β-glucani derivati da fonti biologiche diverse possono mostrare attività biologiche anche qualitativamente diverse: mentre infatti quelli di origine fungina risultano potenzialmente efficaci nella difesa antitumorale e nel promuovere la tonicità del sistema immunitario, quelli di derivazione cerealicola e da leguminose sono più attivi nel ridurre i livelli di colesterolo e degli zuccheri nel sangue (Bousquet, et al.,1988; Dritz et al., 1995).
Attività in vivo dei β-glucani
Nel Beta Glucan Research, un database che riporta le ricerche scientifiche sui β-glucani (https://www.betaglucan.org), sono diverse le evidenze scientifiche relative a queste sostanze, soprattutto in ambito nutrizionale e dietoterapico. A queste strutture polimeriche sono state attribuite diverse proprietà funzionali, quali:
– Riduzione del colesterolo plasmatico attraverso la regolazione della biosintesi di quello endogeno;
– Riduzione della glicemia post- prandiale;
– Rallentamento dello svuotamento gastrico grazie alla loro viscosità, con effetti positivi sul senso di sazietà;
– Miglioramento della qualità del biota intestinale;
– Miglioramento della risposta insulinica;
– Effetto immunostimolante, potenziando l’attività dei macrofagi e sostenendo le difese primarie aspecifiche;
– Effetto radical scavenger.
Diversi studi in vitro hanno dimostrato l’effetto dei β-glucani sulla riduzione del colesterolo. I meccanismi biochimici implicati non sono stati completamente chiariti anche se, per esempio, studi condotti in pane e biscotti arricchiti in β-glucani non hanno dimostrato un particolare effetto positivo sulla riduzione del colesterolo LDL, al contrario di quanto osservato grazie al consumo di succo d’arancia arricchito in β-glucani. Questo risultato rivela che i processi tecnologici di impastamento e fermentazione contribuiscono ad attenuare l’efficacia funzionale dei β-glucani. Alla base dell’effetto ipocolesterolemizzante dei β-glucani sembra ci sia l’aumento della viscosità a livello intestinale dei cibi ingeriti che determina la riduzione del colesterolo assorbito attraverso l’utilizzo di colesterolo endogeno. Questa alterazione della viscosità gastrointestinale è dovuta all’abilità dei β-glucani – come di molti eteropolisaccaridi – di formare reticoli gelatinosi per la capacità di adsorbire importanti quantità di acqua (Reimer et al., 2000).
Il primo studio di nutri-genomica in merito ha evidenziato sia una riduzione nell’espressione dei geni coinvolti nel trasporto intestinale di acidi grassi e colesterolo che una down-regulation dell’espressione dei geni utili alla sintesi di acidi grassi e di colesterolo a livello epatico. Inoltre, ulteriori studi dimostrano che l’effetto ipocolesterolemizzante dei β-glucani è associato alla up-regulation dell’enzima colesterolo-7-alfa-idrolasi (CYP7AI) implicato nella via metabolica ove il colesterolo viene convertito in sali biliari. La maggior parte degli studi condotti indica che i β-glucani contribuiscono a ridurre il colesterolo totale abbassando la concentrazione delle lipoproteine LDL; in alcuni test sono stati osservati anche una riduzione dei trigliceridi ed un incremento di concentrazione delle HDL. L’efficacia ipocolesterolemizzante dei β-glucani, però, non sembra dipendere dall’origine botanica dal momento che l’efficacia tra quelli derivati da orzo e da avena non rivela differenze significative (Delaney et al., 2003).
Nel 2006 la Food and Drug Administration (FDA, 2019) ha approvato l’utilizzo per l’industria alimentare di claims salutistici che evidenziano i benefici dei β-glucani da orzo e da avena, in particolare nel ridurre il rischio di sviluppo di malattie cardio-coronariche, specificando che comunque l’efficacia è vincolata all’adozione di una dieta a basso contenuto di grassi saturi e colesterolo. Anche l’European Food Safety Agency (EFSA 2006) ha dato il suo consenso per queste proprietà, stabilendo che un consumo minimo quotidiano di β-glucani pari a 3 g/die (all’interno di un intake giornaliero di 28 g di fibre totali) ha un beneficio evidente nell’abbassamento del colesterolo.
I β-glucani introdotti nell’alimentazione quotidiana hanno mostrato un effetto positivo anche sulla modulazione della glicemia post-prandiale e sulla risposta insulinemica, determinando un abbassamento del picco glicemico e la conseguente riduzione della risposta insulinica. Questa proprietà funzionale è stata la più studiata e sembra sia principalmente collegata alle caratteristiche reologiche dei β-glucani. Le risposte fisiologiche, in seguito all’ingestione di bevande con differente contenuto in glucani, sono influenzate dalla concentrazione delle fibre aggiunte e dal loro peso molecolare. Esiste un effetto inversamente proporzionale tra la risposta glicemica e la viscosità degli alimenti arricchiti in fibra. Inoltre, anche la struttura della matrice alimentare contenente β-glucani può influenzare la risposta glicemica. In effetti, alimenti ricchi di amidi e contenenti β-glucani sono meno suscettibili all’attacco enzimatico e, quindi, difficilmente idrolizzabili grazie alla “barriera” determinata dalle caratteristiche chimico-fisiche della fibra. La degradazione dell’amido e la conseguente risposta glicemica risulterebbero quindi più attenuate. Studi in vitro, effettuati attraverso l’aggiunta di differenti concentrazioni di β-glucani in prodotti della panificazione, riportano che l’effetto ipoglicemizzante può dipendere dal modo in cui le fibre vengono aggiunte alla matrice amidacea che conseguentemente impedisce la gelatinizzazione dell’amido e riduce la suscettibilità enzimatica. Analogamente alla risposta colesterolemica, l’origine botanica dei β-glucani non sembra influenzare la risposta glicemica e insulinica in vivo. Il controllo della glicemia attraverso un’alimentazione fortificata con β-glucani è di beneficio nella prevenzione dell’obesità, del diabete e di patologie correlate (Beer et al., 1997).
Gli effetti positivi dei β-glucani legati al consumo di alimenti che li contengono riguardano anche la capacità di indurre un elevato senso di sazietà (Beck et al., 2009). Tale effetto può essere dovuto a vari motivi tra i quali si possono sottolineare:
– la capacità di trattenere acqua, che porta a una maggiore distensione gastrica inducendo un senso di sazietà;
– il miglioramento della risposta glicemica, determinata dall’abbassamento del picco glicemico determinando il prolungamento del senso di sazietà;
– la viscosità della fibra rallenta lo svuotamento gastrico favorendo nuovamente la percezione del senso di sazietà.
Effetti prebiotici e immunostimolanti
Diversi studi clinici (Ka-Lung e Keung Cheung, 2013) hanno evidenziato anche l’attività prebiotica dei β-glucani, in quanto favoriscono la selezione e la crescita nell’intestino di microrganismi appartenenti ai generi Bifidobacterium e Lactobacillus che, fermentando la frazione fibrosa contenente β-glucani, producono acidi grassi a catena corta (SCFA) (Evangelisti e Restani, 2011).
È stato scientificamente documentato che l’effetto prebiotico dei β-glucani determina a sua volta un effetto preventivo nei confronti del cancro al colon, limitando la digestione dell’amido, contribbuendo all’incremento della massa fecale e un’aumentata produzione di SCFA (Dongowsky et al., 2002).
I β-glucani sono inoltre conosciuti per le proprietà immunomodulatorie. Studi eseguiti in vitro e in vivo (Del Cornò et al., 2020) hanno evidenziato che tale attività dipende dalla struttura, dal peso molecolare e dal livello di ramificazione dei β-glucani. Il meccanismo di immunomodulazione è associato all’attivazione di macrofagi e cellule-T e alla differenziazione e attivazione dei linfociti T. La scoperta di tale proprietà si è consolidata con le conoscenze relative al recettore Dectin1, ritenuto il recettore specifico dei β-glucani presente nei leucociti, in particolare nei macrofagi, fondamentali nelle reazioni immunitarie (Czop, 1986). Alcuni studi hanno inoltre dimostrato che i β-glucani dell’avena hanno effetti antimicrobici contro Escherichia coli e Bacillus subtilis; i β-glucani dei lieviti (da Saccharomyces cerevisiae) hanno invece effetto antimicrobico contro Staphylococcus aureus (Di Luzio e Williams, 1978).
Sembra quindi che l’effetto immunomodulante dei β-glucani dipenda dalla fonte (da cereali, da lievito, da funghi o batteri) e, nel caso dei cereali, dall’origine botanica (Beer et al., 1997).
Attività anti-ossidante e protettiva verso l’esposizione ad agenti pro-ossidanti
Patchen et al., (1990) hanno anche suggerito che l’assunzione di β-1,3-glucano dovrebbe prevenire la vulnerabilità a infezioni dopo terapie chemioterapiche e radiazioni nel trattamento del cancro. Hanno inoltre riportato che il β-1,3-glucano sembra agire come scavenger dei radicali liberi (antiossidante) e può anche proteggere i macrofagi da danni da radiazioni, tossine, metalli pesanti (Patchen, et al., 1990).
Carrow (1996) ha eseguito dei test clinici su un gruppo di pazienti sottoposti a radioterapia per il trattamento terapeutico del cancro al seno, integrando la loro dieta con l’aggiunta del β-1,3-D-glucano: si è osservato che la specificità del sito recettoriale Dectin 1 del macrofago può spiegare perché β-1,3-glucano “sia uno dei più potenti stimolatori della risposta immunitaria”.
Adiuvante antibiotico ed effetti preventivi di infezione
Studi in vivo dimostrano che il β-1,3-glucano può ridurre la quantità di antibiotici convenzionali necessari in condizioni infettive. “L’uso clinico di immunomodulatori può alterare l’uso convenzionale e il dosaggio di antibiotici”, ha dichiarato il direttore dello studio William Browder della Tulane University di New Orleans, nel 1987. Browder e altri autori hanno pubblicato degli studi sui benefici dell’utilizzo di β-1,3-glucano per stimolare la risposta immunitaria e prevenire l’infezione in pazienti sottoposti a intervento chirurgico per trauma fisico (Williams et al., 1996). I pazienti trattati con β-glucano hanno anche avuto un maggiore aumento dei fattori immunitari chiave entro tre giorni e un tasso di mortalità molto più basso rispetto ai pazienti non trattati con β-glucano.
Scienziati dell’Università Statale di San Paolo in Brasile hanno testato la capacità del β-glucano di potenziare il sistema immunitario contro un’infezione fungina della pelle. La ricerca ha mostrato che i pazienti ricevevano il β-glucano, nonostante fossero malati gravemente, avevano una risposta più forte e più favorevole alla terapia risptto ai pazienti non trattati (Nucci et al., 2016).
Altre attività biologiche del β-glucano
In letteratura si annoverano altre attività come:
– attività anticoagulante (Mantovani et al., 2008);
– antimutagenica: alcuni studi (Tohamy et al., 2003) dimostrano l’efficacia dei β-glucani nel ridurre il danno causato da agenti mutageni;
– effetto protettivo anti-genotossico e anti-citotossico; il meccanismo è attribuibile all’abilità dei β-glucani da S. cerevisiae nel disattivare i radicali liberi (Brown et al.,1993).
Veicolazione di principi attivi
Esistono già ricerche che descrivono l’uso dei β-glucani come componenti di sistemi di rilascio di principi attivi. Un esempio è il Curdlano, un β-1,3 glucano studiato per l’uso nella preparazione di compresse contenenti teofillina, un alcaloide per il trattamento di malattie respiratorie come l’asma. Queste formulazioni sono state preparate con particelle essiccate per nebulizzazione di Curdlano e teofillina (Vetvicka, Vaclav. 2011). Lo scleroglucano è invece un polisaccaride naturale, prodotto da funghi del genere Sclerotium, che è stato ampiamente studiato per varie applicazioni commerciali (recupero di olio secondario, smalti ceramici, cibo, vernici, ecc.) e mostra anche diverse interessanti proprietà farmacologiche. Lo scleroglucano è stato applicato come rivestimento nelle formulazioni liposomiali e nella preparazione di idrogel.
Di recente, la ricerca si è comunque concentrata sui glucani derivati da lievito. Il β-glucano derivato da S. cerevisiae può essere trasformato in microparticelle vuote e altamente porose. Il loro uso è stato descritto più di 15 anni fa quando sono state sviluppate microcapsule di carboidrati di β-glucano per produrre veicoli di antigeni specifici e di rilascio del farmaco. Aouadi (2009) ha dimostrato l’uso altamente efficace di particelle di siRNA (short interfering RNA) incapsulate con β-glucano come veicolo per via orale per silenziare i geni nei macrofagi di topo in vivo (Aouadi et al., 2009). Ognuno di questi, nonostante offra una vasta gamma di approcci individuali, si basa su una singola caratteristica del glucano prontamente fagocitato da numerosi tipi di cellule.
Polifenoli e flavonoidi
Tra le biomolecole di interesse, i composti fenolici risultano essere particolarmente indicati per quanto riguarda una loro applicazione nel contesto fitosanitario e salutistico. I polifenoli si trovano nella maggior parte degli alimenti di derivazione vegetale (Mattivi et al., 2001) sia sotto forma libera che coniugata, quest’ultima più frequente (Vinson et al., 2001).
Tra i polifenoli, i flavonoidi sono una classe di metaboliti secondari tra le più diffuse nelle piante superiori. Possono essere in forma glicosilata o in forma agliconica, rispettivamente con o senza subunità zuccherina legata allo scheletro di base. Lo scheletro dell’aglicone è un difenilpropano che forma un anello piranico con l’anello benzenico.
I flavonoidi sono ampiamente distribuiti nel regno vegetale e rappresentano oltre la metà degli 8000 composti fenolici presenti in Natura (Harborne et al., 1999 ), tuttavia la loro concentrazione varia da pianta a pianta e in diversi organi della stessa pianta (Dinelli et al., 2006). Molte piante sono considerate eccellenti fonti di flavonoidi che potrebbero essere utilizzate non solo per conservare gli alimenti ma anche per contribuire a un’alimentazione sana, in quanto considerati antiossidanti in taluni casi ancora più potenti delle vitamine C ed E ( Sokol-Letowska et al., 2006). Frutta e verdura sono state ampiamente studiate per il loro contenuto di flavonoidi. Le verdure a foglia verde, gialle e rosse (per esempio cipolla, cavolo, cavolfiore, broccoli) e frutti di colore scuro (per esempio specie di agrumi, bacche, uva, mela, prugna) sono ricchi di flavonoidi.
I fagioli secchi comuni contengono una vasta gamma di flavonoidi, tra cui flavonoli, loro glicosidi, antociani, proantocianidine e isoflavoni, nonché alcuni acidi fenolici (Long-Ze et al., 2008). In P. vulgaris, i composti fenolici si trovano principalmente nel tegumento del seme (Desphande et al., 1982; De Mejía et al., 1999).
In generale, nel genere Phaseolus è stato identificato tra i componenti principali il kaempferolo, un flavonolo che agisce come antiossidante. Molti studi, anche se non di tipo clinico, suggeriscono che il consumo di kaempferolo può ridurre il rischio di vari tipi di cancro e attualmente sono state riscontrate delle evidenze in vitro e in vivo interessanti per l’attività antitumorale (Chen, e Chen Y.C. 2013). Il contenuto totale di flavonoli varia da 0.19 a 0.84 g/kg ed è simile a quello riportato da Romani et al. (2004). Secondo Beninger e Hosfield (1999), nel fagiolo comune il kaempferolo 3-O-glucoside è il principale flavonolo presente in tutti i campioni analizzati nello studio, con una percentuale compresa tra il 47% e il 68% del contenuto totale di flavonoli. Il secondo flavonolo più abbondante è il kaempferol 3-O-glucoside (dove il glicone è caratterizzato da glucosio e xilosio), con una percentuale compresa tra il 16% e il 33% del contenuto totale di flavonoli. Le analisi dello stesso genotipo, campionate nella posizione originale in diversi anni, hanno evidenziato una grande variabilità nel contenuto totale di flavonoli e nella relativa abbondanza di diversi derivati del kaempferolo.
*L’articolo rielabora la tesi di laurea in Chimica e Tecnologie Farmaceutiche svolta dall’autore presso l’Università degli Studi di Ferrara; relatore prof.ssa Alessandra Guerrini, correlatore dott. Massimo Tacchini.
Prosegue sul prossimo fascicolo