
* Giovanna Serenelli
MA LE PIANTE SONO ESSERI INTELLIGENTI?
Il metabolismo primario delle piante è simile a quello degli altri essere viventi, ma esiste quello secondario che attraverso vie metaboliche ben definite produce composti fondamentali alla loro vita, caratterizzata dall’immobilità. Nella prima parte di questo articolo una panoramica dei processi biologici che in qualche modo “smentiscono” questa caratteristica peculiare dei vegetali.
* Giovanna Serenelli
L’incipit è sicuramente inadatto a un articolo scientifico odierno e ben si attaglia allo stile di ormai antichi articoli ottocenteschi. Di fatto la domanda del titolo mi tormenta da qualche anno, da quando, per occuparmi di nanotecnologie, mi capitò un articolo scientifico in cui si parlava di piante e l’autore, in poche righe, metteva in evidenza la superiorità di queste rispetto ad alcune capacità del nostro sistema nervoso. Finalmente la scienza offre conoscenze adeguate a poter almeno in parte rispondere al quesito.
In genere tutti noi sappiamo perfettamente che un vegetale è un essere vivente in grado di crescere, riprodursi, morire e che deve essere nutrito e annaffiato, dopo di che, di questo essere apprezziamo a volte la bellezza, i frutti, l’ombra e la frescura in caso di caldo, il legno per bruciarlo o per usarlo per la costruzione per esempio, ma non solo, di mobili, i principi attivi utili come medicinali: ne abbiamo insomma una visione strettamente utilitaristica. In fondo una pianta non cammina, non parla, non scodinzola, non ci lecca le mani… Ma è realmente così? Per capire meglio dobbiamo interessarci di biologia vegetale e in particolare a una sua branca specialistica che è la Neurobiologia vegetale. La definizione di questa branca scientifica che può essere controversa, specie se si pensa ai neuroni del tessuto nervoso animale, la riprenderei letteralmente,
e non per il gusto di copiare dagli scritti di Stefano Mancuso che, per l’appunto, la definisce «una disciplina scientifica che si occupa della struttura, funzione, sviluppo, genetica, biochimica, fisiologia, farmacologia e patologia dei sistemi (cellule, tessuti, organi) che regolano la risposta della pianta a stimoli interni ed esterni. Lo studio del comportamento e dell’apprendimento sono anche una divisione della neurobiologia vegetale» [1].
Per precisione diciamo che l’autore qui sopra citato non è uno sprovveduto sognatore, ma il Direttore del LINV dell’Università degli Studi di Firenze, cioè dell’International Laboratory of Plant Neurobiology, fondato nel 2005, oltre che (e tra il tanto altro) membro fondatore della International Society for Plant Signaling & Behavior, uno dei ‘world changers’ del 2013, secondo il New Yorker.
Secondo le nostre comuni conoscenze, molti sono gli errori di giudizio che ci portiamo dietro e che qui elenchiamo.
Le piante non si muovono
Nessuno di noi ha mai visto una pianta camminare o spostarsi. Ma già qui siamo di fronte a un’affermazione che sostanzialmente sappiamo non essere totalmente vera. Perché se l’intero organismo è affondato con le sue radici nel terreno e non può spostarsi, tuttavia le piante hanno parti dotate di capacità di movimento, che già conosciamo anche per diretta esperienza, e di molti di noi, personale. Le piante in effetti possono compiere movimenti attivi: sismonastici o tigmonastici, nictinastici, termonastici e fotonastici.
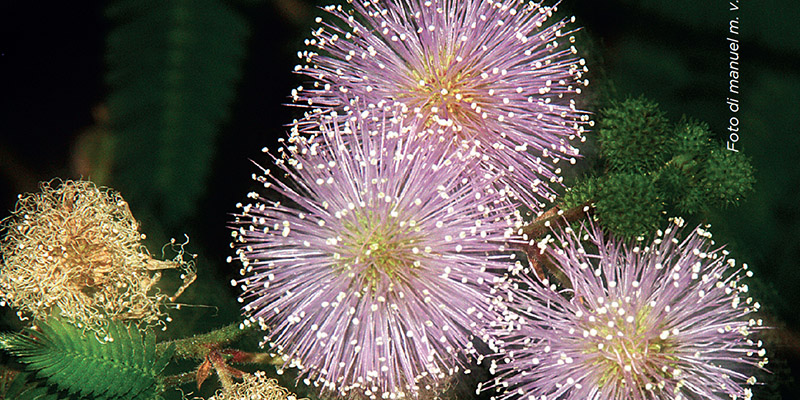
Per esempio, consideriamo la mimosa (Mimosa pudica L.), una Mimosacea le cui foglie sono provviste di una proprietà nota come tigmonastia. Se tocchiamo le sue foglie, paripennate, composte da foglioline o meglio pinnule (sino a 25), queste si chiudono e si possono anche abbassare i rametti più sottili. Cessato lo stimolo tattile la situazione torna alla normalità: le foglioline si riaprono e i rametti tornano nell’originaria posizione. Il responsabile di tutto ciò è il pulvino, un ingrossamento alla base della foglia o comunque del picciolo, alla cui superficie sono presenti numerose minuscole rughe che incrementano la superficie disponibile per l’espansione o la contrazione volumetrica [2] di questo piccolo organo.
Ma come è fatto un pulvino [Fig.1] e come funziona [Fig.2]? Intanto la Mimosa ha più di un tipo di pulvino: quello principale alla base del picciolo, un sub-pulvino là dove la foglia e il picciolo si uniscono e dei pulvinuli o pulvini terziari, alla base di ciascuna pinnula [3].
Procedendo, all’osservazione microscopica, dall’esterno verso il centro incontriamo uno strato di epidermide, una zona corticale costituta da una trentina di strati di cellule parenchimatiche di forma e dimensioni irregolari e al centro un vaso [5, 6]. Queste cellule di natura parenchimatica sarebbero proprio quelle che Toriyama, nel 1953, identificò come cellule motorie, responsabili dei movimenti foliari [7]. Non mancano fibre gelatinose e fibre settate, che non sono esattamente fibre, così come le intendiamo comunemente, ma cellule, queste ultime, con protoplasma vivo e ricco di mitocondri. Quanto alle fibre gelatinose sono anch’esse cellule di forma allungata, a crescita intrusiva, la cui parete è in genere costituita da tre differenti strati [8].
Una precisazione è doverosa a proposito dei vasi; abbiamo parlato di un vaso centrale, ma in realtà, spostandosi verso la foglia i vasi sono più numerosi e se ne riconoscono sei gruppi indipendenti e il numero di vasi a disposizione incrementa la loro conduttanza idraulica e facilita afflusso e deflusso di acqua nelle /dalle cellule [9] in cui intervengono anche le acquaporine presenti nei vacuoli e nei tonoplasti (le membrane che circondano i vacuoli) cellulari [10].
Stabilito che responsabili del movimento delle foglie sono le cellule motorie resta da stabilire come le foglie possano reagire allo stimolo, come cioè si accorgano di essere toccate. I pulvini sono dotati di recettori specifici, si tratta di meccano-recettori, sensibili agli stimoli meccanici, di cui fanno parte le cellule recettoriali rosse [Fig. 3], così dette per il colore rosso che esibiscono spontaneamente, senza alcuna colorazione di laboratorio, in relazione al loro contenuto in tannini [11]. I prodotti dei geni FLYCATCHER1, FLYCATCHER2 e DmOSCA e in particolare le proteine codificate sembrano essere importanti nel processo di risposta al tocco con particolare riguardo della proteina FLYCATCHER1 [12].
Le cellule recettoriali rosse sono in comunicazione con le cellule motorie grazie ai plasmodesmi, strutture particolari delle membrane delle cellule vegetali in cui minuscoli canali mettono in comunicazione due differenti cellule, anche perché le membrane delle cellule vegetali non sono continue.
Lo stimolo meccanico eccita le cellule rosse e il loro potenziale d’azione (in cui probabilmente interviene anche il calcio immagazzinato nei vacuoli contenenti tannini) viene propagato grazie ai plasmodesmi [Fig. 4], alle cellule motorie che perdono ioni potassio e cloro riducendo così la pressione osmotica intracellulare e dunque il turgore cellulare. La questione riguardante il turgore cellulare è molto probabilmente assai più complessa [13] rispetto a quella che qui descriviamo, ma la competenza riguarda strettamente i botanici. Il processo è comunque velocissimo e ne vediamo gli effetti in un paio di secondi al massimo. Il tempo di riapertura completa è di 30 minuti. Lo stesso pulvino può muoversi, piegandosi in differenti direzioni, potendo così spostare onnidirezionalmente il picciolo [9].
Oltre alla Mimosa pudica altre Fabaceae sono capaci di movimenti rapidi delle foglie, tra queste Chamaecrista nictitans (L.) Moench [Fig. 5] o Cassia nictitans (L.) e la Pianta telegrafo [Fig. 6] o Pianta danzante (Desmodium gyrans o Codariocalyx motorius). I pulvini, come nella Mimosa, ne determinano i movimenti.
In quest’ultima, che è anche una pianta medicinale, alla base della foglia lunga 3-7 cm ci sono una o due foglioline assai più piccole, lunghe circa 1 cm, le quali si spostano con movimenti ritmici orizzontalmente o verso l’alto durante il giorno, mentre penzolano verso il basso durante la notte [14]. Il ritmo diurno è di circa 200 secondi [15]. Darwin già parlava di piante in stato di veglia e di piante che dormono [16] anche se non tutti condividono oggi [17] questa deliziosa, antropomorfizzata, terminologia. Il motivo di questi movimenti non è chiaro, alcuni pensano trattarsi di una misura difensiva contro farfalle che deporrebbero uova sulle sue foglie o altri artropodi alati che considererebbero il ‘posto’ già occupato, o ancora, contro mammiferi erbivori. Le farfalle quando non volano compiono infatti con le ali movimenti simili a quelli delle foglioline della pianta [18]. Gli stimoli che attivano il movimento sono vari e vanno dal tocco alle vibrazioni determinate dai suoni e non è improbabile che le foglioline servano anche a dirigere la foglia più grande in una posizione adatta a sfruttare al massimo la luce solare per un’ottimale fotosintesi [19].
Se vogliamo, altre piante capaci di movimento sono quelle carnivore. Ne esistono almeno 600 specie, in grado di catturare, uccidere e digerire piccoli animali, in genere insetti. Questo genere di nutrizione è particolarmente utile a queste piante poiché usualmente vivono in terreni poveri di sostanze nutritive (azoto e fosforo), ma se necessario possono comunque comportarsi come piante ’normali’ traendo nutrienti dal terreno che hanno a disposizione. Queste piante usano differenti tipi di trappole: ascidi, trappole adesive, a scatto, ad aspirazione e a nassa.
L’ascidio, dal greco ἀσκίδιον, cioè piccolo otre, è una struttura tubulare o a coppa che deriva dalla metamorfosi di un lembo o parte di lembo fogliare che non abbisogna di movimenti attivi per catturare la preda. L’insetto attratto dai colori o dagli odori del dolce nettare secreto, si posa sul bordo dell’ascidio, che è scivoloso quando umido, e cade nella trappola [20].
Saranno poi gli enzimi contenuti nel fluido della trappola [Fig. 7] a digerire la preda [21]. Questo stesso fluido è, se non assolutamente sterile, provvisto di proprietà battericide e micostatiche [22].
Le trappole adesive si avvalgono della secrezione di mucillagini adesive che intrappolano la preda, tuttavia la cattura può essere preceduta da un movimento attivo di tentacoli periferici non appiccicosi che letteralmente catapultano l’insetto su tentacoli più interni provvisti di mucillagine adesiva, verso il centro della trappola. Questi ultimi si avvolgeranno attorno al malcapitato insetto catturandolo definitivamente. È il caso di Drosera glanduligera. Il movimento dei tentacoli catapulta non è ripetibile, ma da questo punto di vista la Drosera non ha problemi, visto che la sua vita è di durata limitata e che ogni 3-7 giorni sviluppa nuove foglie [24]. La mucillagine adesiva è, in Drosera capensis costituita da acqua e vari polisaccaridi acidi (xilosio, mannosio, galattosio, acido glucuronico) e un estere solfato. Sono presenti anche ioni di calcio, magnesio e potassio [25]. L’adesivo essiccandosi forma una rete di nanofibre [Fig. 8] di polisaccaridi associate a nanoparticelle del diametro variabile tra i 50 e i 70 nanometri [23].
Il controllo del movimento dei tentacoli è dovuto all’azione di ormoni quali auxina e jasmonato [27]. Il movimento può essere innescato dal contatto con la testa del tentacolo [28] con l’avvio di una serie di potenziali di azione che potrebbero essere bloccati con l’azione di un anestetico. È quello che succede per esempio a Dionaea muscipola o alla stessa Mimosa [29], ma non è un concetto nuovissimo come ben riportato in un recente e moderno lavoro [30].
Le trappole a scatto sono spettacolari trappole costituite da due lobi, dotati di ‘denti’ periferici che all’atto della chiusura si ingranano gli uni con gli altri impedendo la fuga della preda catturata.
L’esempio classico è quello di Dionaea muscipula, nota anche come Venere acchiappamosche [Figg. 9-10] che a volte si trova in vendita nei nostri negozi di fiori o anche in qualche supermercato.
Al centro di ciascun lobo della trappola ci sono tre ‘peli sensoriali’ che al contatto con l’insetto attivano la trappola stessa. Lo stimolo meccanico deve essere ripetuto almeno due volte entro 30 secondi e le cellule sensibili, veri e propri meccanosensori, possono generare un potenziale d’azione, un segnale elettrico insomma, che viene trasmesso alla costola (nervatura centrale) della trappola [31] e diffuso alle cellule motorie che riducendo il loro turgore, sulla faccia interna della trappola ne consentono la chiusura. Le due metà della trappola passano infatti da una forma convessa, angolate a 60°, a una forma concava verso l’interno. Il potenziale d’azione deve raggiungere un livello minimo per poter determinare il suo effetto e se il primo stimolo non riesce a far raggiungere questo livello, nell’arco dei 30 secondi di cui abbiamo detto sopra, la pianta lo ricorda e a esso sommerà quello dello o degli stimoli successivi, sino al compimento dell’azione. La ‘memoria’ può comunque estendersi sino a un tempo di almeno 5 ore [32].
Trappole ad aspirazione sono caratteristiche del genere Utricularia (220 specie circa); queste piante che generalmente vivono in acque dolci o in terreni saturi di acqua sono provviste di piccole trappole (circa 1-5 mm di dimensione) simili a vescicole chiuse da una sorta di porta mobile, note come utriculi. Sul versante esterno di questa porta sono inseriti 4 piccoli peli. Quando toccati determinano l’apertura della porta. Poiché all’interno della trappola la pressione è bassa l’acqua entra all’interno della trappola trascinando con sé la preda. Le pareti della trappola si distendono e la ‘porta di entrata’ si chiude. In realtà le pareti dell’utricolo sono permeabili all’acqua che viene attivamente pompata all’esterno da specifiche ghiandole, risultando così a pressione inferiore rispetto a quella dell’ambienta acquatico in cui la pianta vive. Quando la porta si apre l’acqua dell’ambiente esterno, a pressione maggiore, entra velocemente nell’utricolo trascinandovi ovviamente la preda [33]. In realtà sembra che l’apertura della trappola sia dipendente più dal gioco di pressioni tra interno ed esterno della trappola e che l’arrivo della preda agisca semplicemente come elemento meccanico sui peli della porta dell’utricolo, che verrebbero utilizzati come semplici leve [34]. In Italia l’Utricularia è conosciuta con il nome di Erba vescica ed è reperibile dalla Toscana alle nostre regioni del Nord.
Le trappole a nassa sono tipiche delle Genlisee (genere Genlisea, almeno 21 specie), che hanno trappole molto particolari. Si tratta di foglie modificate presenti nel sottosuolo. Hanno caratteristicamente la forma di una Y rovesciata. Le branche della Y, avvolte in quella che sembra una spirale molto lassa, sono punti di ingresso per le prede che vengono forzate, da minuscoli peli diretti verso l’interno, a salire verso la branca unica ove è presente una camera digestiva [35]. Un nome comune, non scientifico, ma chiarificatore della struttura della trappola, è quello di pianta cavatappi.
Lasciando da parte mimose e piante carnivore che abbiamo qui sopra abbastanza sommariamente descritto, ricordiamo altri movimenti che sono sotto gli occhi di tutti noi.
Pensiamo un attimo ai fiori. I fiori, in genere, si aprono con la luce del giorno e si chiudono di notte, grazie alla presenza di fotorecettori (fitocromi e criptocromi), secondo un ritmo circadiano [35]. Di fatto le piante riconoscono la presenza e l’assenza della luce oltre a intensità e lunghezza d’onda e orientamento ed è proprio verso la luce che si orientano, hanno un ritmo circadiano (giorno/notte), possono poi riconoscere il rapporto che l’ambiente offre tra luce rossa assorbita dalla clorofilla (ambiente soleggiato) e rosso lontano (ambiente ombreggiato) e infine rilevare la presenza di radiazioni ultraviolette B. Alcuni recettori, il Fitocromo Pr e il Pfr, sono convertibili l’uno nell’altro (il Pr è in forma inattiva) e la loro attivazione scatena una serie di eventi, qui troppo complessi da descrivere, che alla fin fine interferiscono con molteplici processi biologici, intervenendo nell’attività genica e non solo nell’apertura e nella chiusura dei fiori [37].
Pensiamo anche al girasole (Heliantus annuus); la sua infiorescenza (capolino) ruota nell’arco della giornata, seguendo, come ci tramanda la tradizione, i movimenti del sole. Sono movimenti che di giorno vanno da est verso ovest, mentre il percorso è inverso nella notte. I movimenti riguardano comunque anche le foglie e, se lo stimolo principale è quello della luce, altri meccanismi intervengono in questo processo: per esempio la curvatura dell’ipocotile (quella parte di fusticino compresa tra i cotiledoni e la radice di una pianticella appena germogliata) verso la luce. Ma se si usano pianticelle de-etiolate (fatte crescere inizialmente al buio e poi esposte alla luce), questi vegetali rispondono alla luce blu (400-500-nm), non a quella rossa dello spettro visibile, compreso tra i 380 e i 780 nm di lunghezza d’onda. Gli eventi che inducono questo fenomeno potrebbero essere il risultato di meccanismi vari, complessi e ingranati anche con il ritmo circadiano [38], ma a noi qui interessa ciò che è possibile osservare con i nostri occhi. I botanici potranno approfondire meglio l’argomento.
Infine, giusto per terminare questa incompleta carrellata, possiamo parlare di ciò che, non a noi, ma agli insetti impollinatori, è ben noto. Ci riferiamo ai movimenti degli stami, quei piccoli organi maschili, raccolti nell’androceo, che ben possiamo vedere nei fiori. È lì che viene portato a maturazione e accumulato il polline. Nel caso degli stami sono possibili almeno quattro tipi di movimenti rapidi ed esplosivi, movimenti a cascata, movimenti lenti e sincroni, movimenti indotti [39]. Può anche succedere che in un fiore gli stami vengano tenuti lontano dal pistillo, poi dopo un paio di giorni cominciano a muoversi verso il pistillo, lo racchiudono e rilasciano il polline [40].
Oltre a ciò, le piante possono ‘dopare’ il nettare in modo da ‘fidelizzare’ i propri insetti impollinatori per esempio con caffeina, che potenzia la memoria della ricompensa nelle api [41] o magari favorire l’accesso su fiori maschili, rispetto a quelli femminili sfruttando intensità di profumo (prevalentemente 1,4-dimetossibenzene) e di colore [42].
*Università Studi Perugia – Facoltà di Medicina e Chirurgia (in retirement)
Prosegue sul prossimo fascicolo
Bibliografia
[1] Stefano Mancuso. Alcuni aspetti di neurobiologia vegetale. SILVÆ Anno II – n. 4 genn-apr 2006 239-251
[2] Kahye Song, Eunseop Yeom & Sang Joon Lee Real-time imaging of pulvinus bending in Mimosa pudica. Scientific Reports. 4, 6466 (2014) 1-8. doi:10.1038/srep06466
[3 Minoru Taya Bio-inspired Design of Intelligent]Materials Proc. SPIE 5051, Smart Structures and Materials 2003: Electroactive Polymer Actuators and Devices (EAPAD), (28 July 2003); https://doi.org/10.111 7/12.484425
[4] Plant Physiology, 3rd ed by Lincoln Taiz and Eduardo Zeiger Publisher: Sinauer Associates; 3 edition (Aug 30 2002)
[5] Tatiane M. Rodrigues , Silvia R. Machado Pulvinus functional traits in relation to leaf movements: A light and transmission electron microscopy study of the vascular system. Micron 39 (2008) 7–16
[6] Tatiane Maria Rodrigues e Sílvia Rodrigues Machado. Anatomia comparada do pulvino, pecíolo e raque de Pterodon pubescens Benth. (Fabaceae – Faboideae). Acta bot. bras. 18(2): 381-390. 2004
[7] Toriyama, H. Observational and experimental studies of sensitive plants. I. The structure of parenchymatous cells of pulvinus. Cytology 18: 283-292 1953).
[8] Ewa J. Mellerowicz, and Tatyana A. Gorshkova. Tensional stress generation in gelatinous fibres: a review and possible mechanism based on cell-wall structure and composition. Journal of Experimental Botany, Vol. 63, No. 2, pp. 551–565, 2012.
[9] Kahye Song, Eunseop Yeom & Sang Joon Lee Real-time imaging of pulvinus bending in Mimosa pudica. Scientific Reports volume 4, Article number: 6466 (2014)
[10] Norbert Uehlein and Ralf Kaldenhoff. Aquaporins and Plant Leaf Movements Annals of Botany, Volume 101, Issue 1, January 2008, Pages 1–4, https://doi. org/10.1093/aob/mcm278.
[11] Tamás Visnovitz, Ildikó Világi, Petra Varró, Zoltán Kristóf Mechanoreceptor Cells on the Tertiary Pulvini of Mimosa pudica L. Plant Signaling & Behavior 2:6, 462-466, November/December 2007.
[12] Carl Procko, Swetha Murthy, William T Keenan, Seyed Ali Reza Mousavi, Tsegaye Dabi, Adam Coombs, Erik Procko, Lisa Baird, Ardem Patapoutian Stretch-activated ion channels identified in the touch-sensitive structures of carnivorous Droseraceae plants Mar 16, 2021 eLife 2021;10:e64250 DOI: 10.7554/ eLife.64250
[13] Alfredo Argiolas, Gian Luigi Puleo, Edoardo Sinibaldi & Barbara Mazzola Osmolyte cooperation affects turgor dynamics in plants Scientific Reports 2016; 6: 30139 DOI: 10.1038/srep30139
[14] A. Kalirajan, J. Savarimuthu Michael, and A. J. A. Ranjit Singh A PRELIMINARY SCREENING OF THE MEDICINAL PLANT DESMODIUM GYRANS (LINN.F) DC FOR ITS ANTIMICROBIAL, PHYTOCHEMICAL AND W5UND HEALING PROPERTIES IJPSR (2012), Vol. 3, Issue 06, 1726-1730.
[15] Bernd Antkowiak, Wolfgang Engelmann Oscillations of apoplasmic K + and H § activities in Desmodium motorium (Houtt.) Merril. pulvini in relation to the membrane potential of motor cells and leaflet movements Planta (1995)196:350- 356.
[16] Charles Darwin Il potere di movimento nelle piante Unione Tipografico-Editrice Torino, 1884
[17] Serena Bedeschi A10/2 – I MOVIMENTI delle PIANTE e dei loro organi Maggio 2016 Fun Science, Sez. Biologia
[18] Simcha Lev-Yadun (2013) The enigmatic fast leaflet rotation in Desmodium motorium, Plant Signaling & Behavior, 8:6, DOI: 10.4161/psb.24473
[19] C. V. K. Ileperuma THE ‘DANCING’ PLANT: CODARIOCALYX MOTORIUS (HOUTT.) OHASHI Sciscitator 2015 / Volume 2
[20] Ulrike Bauer, Marion Paulin, Daniel Robert, and Gregory P. Sutton Mechanism for rapid passive-dynamic prey capture in a pitcher plant Proceedings of the National Academy of Sciences Oct 2015, 112 (43) 13384-13389; DOI: 10.1073/ pnas.1510060112
[21] Sandy Rottloff, Sissi Miguel, Flore Biteau, Estelle Nisse, Philippe Hammann , Lauriane Kuhn, Johana Chicher, Vincent Bazile, Laurence Gaume, Benoit Mignard, Alain Hehn and Frédéric Bourgaud Proteome analysis of digestive fluids in Nepenthes pitchers Annals of Botany 117: 479–495, 2016
[22] Franziska Buch, Matthias Rott,, Sandy Rottloff,, Christian Paetz, Ines Hilke3, Michael Raessler and Axel Mithofer, Secreted pitfall-trap fluid of carnivorous Nepenthes plants is unsuitable for microbial growth Annals of Botany 111: 375–383, 2013
[23] Wolfram Adlassnig, Marianne Peroutka, and Thomas Lendl Traps of carnivorous pitcher plants as a habitat: composition of the fluid, biodiversity and mutualistic activities Ann Bot. 2011 Feb; 107(2): 181–194. Free in Journal
[24] Poppinga S, Hartmeyer SRH, Seidel R, Masselter T, Hartmeyer I, Speck T (2012) Catapulting Tentacles in a Sticky Carnivorous Plant. PLoS ONE 7(9): e45735. https://doi.org/10.1371/journal. pone.0045735
[25] KARL ROT and ROLAND SCHAUER PHYSICAL AND CHEMICAL PROPERTIES OF THE MUCIN SECRETED BY DROSERA CAPENSIS Pbytochemistry, 1977. Vol. 16, pp. 1365-1368
[26] Mingjun Zhang, Scott C Lenaghan, Lijin Xia, Lixin Dong, Wei He, William R Henson, Xudong Fan Nanofibers and nanoparticles from the insectcapturing adhesive of the Sundew (Drosera) for cell attachment Journal of Nanobiotechnology 2010, 8:20
[27] Yoko Nakamura, Michael Reichelt, Veronika E. Mayer and Axel Mithofer Jasmonates trigger prey-induced formation of ‘outer stomach’ in carnivorous sundew plants Proc. Biol. Sci.; 280: 20130228, 2013
[28] Jean-Pierre RUBINSTEIN, Roger PRAT Les plantes carnivores Drosera (Droseraceae) Biologie et Multimédia – Sorbonne Université – UFR des Sciences de la Vie In: http://www.snv.jussieu.fr/ bmedia/carnivore/05-drosera.html
[29] Thiago Paes de Barros De Luccia Mimosa pudica, Dionaea muscipula and anesthetics Plant Signaling & Behavior 7:9, 1163-1167 2012
[30] Alexandre Grémiaux, Ken Yokawa, Stefano Mancuso and František Baluška Plant anesthesia supports similarities between animals and plants Claude Bernard’s forgotten studies Plant Signaling & Behavior 9, e27886; January; 2014
[31] Plant Neurons? Sensation and action in the Venus Flytrap Wednesday, March 14, 2012 In: http://cellularscale.blogspot. com/2012/03/plant-neurons-sensation-and-action-in.html)
[32] R. M. Benolken and S. L. Jacobson Response Properties of a Sensory Hair Excised from Venus’s Flytrap The Journal Of General Physiology 56 (1), 64-82, 1970
[33] Olivier Vincent and Philippe Marmottant Carnivorous Utricularia The buckling scenario Plant Signaling & Behavior 6:11, 1752-1754; November 2011)
[34] L Adamec Firing and resetting characteristics of carnivorous Utricularia reflexa traps: physiological or only physical regulation of trap triggering Phyton-Annales Rei Botanicae 52, 281–290, 2012
[35] Reut, Markus S. Trap structure of the carnivorous plant Genlisea (Lentibulariaceae) Bot Helv 103:101-111, 1993
[36] Jianfang Bai, Saneyuki Kawabata Studies on the regulation of diurnal flower opening and closure rhythms by circadian clocks The Horticulture Journal 84 Issue 2 Pages 148-155, 2015
[37] Haiyang Wang and Xing Wang Denga Phytochrome Signaling Mechanism The arabidopsis book, 9, e0148. doi:10.1199/ tab.0148 Renato D’OVIDIO Università degli Studi della Tuscia)
[38] Joshua P. Vandenbrink, Evan A. Brown, Stacey L. Harmer, Benjamin K. Blackman Turning heads: The biology of solar tracking in sunflower Plant Science 224, 20–26, 2014
[39] Diego F. Angulo, Victoria Sosa And José G. García-Franco Floral Movements: Stamen Motion In Berberis Trifoliolata Botanical Sciences 92 (1): 141-144, 2014
[40] Hiroshi Azuma, Masao Toyota And Yoshinori Asakawa FloralScent Chemistry and Stamen Movement of Chimonanthus praecox (L.)Link (Calycanthaceae) ActuPhytotax.Geebot.56 (2):197-201 (2005
[41] G. A. Wright, D. D. Baker, M. J. Palmer, D. Stabler, J. A. Mustard, E. F. Power, A. M. Borland, and P. C. Stevenson Caffeine in floral nectar enhances a pollinator’s memory of reward Science. 2013 March 8; 339(6124): 1202–1204. 2013
[42] Dötterl S, Glück U, Jürgens A, Woodring J, Aas G. Floral reward, advertisement and attractiveness to honey bees in dioecious Salix caprea. PLoS One. 2014;9(3), 27 Mar. 2014, doi:10.1371/journal.pone.0093421.

Giovanna Serenelli
Il metabolismo primario delle piante è simile a quello degli altri essere viventi, ma esiste quello secondario che attraverso vie metaboliche ben definite produce composti fondamentali alla loro vita, caratterizzata dall’immobilità. Nella prima parte di questo articolo una panoramica dei processi biologici che in qualche modo “smentiscono” questa caratteristica peculiare dei vegetali.
Natural 1